HR项目文章 | 一片紫叶子背后的跨物种基因交流:白菜如何获得高花青素性状?
文章题目:Near telomere‑to‑telomere genome assembly enables the discovery of introgressed purple‑leaf gene BraMYB114 in pak choi (Brassica rapa subsp. chinensis)
文章主题:T2T基因组组装助力发掘小白菜的渐渗型紫叶基因BraMYB114
发表期刊:Horticulture Research
影响因子:9.5
研究团队:赣南师范大学 谭晨教授、陈道宗副教授
组学技术:植物基因组+靶向代谢组+转录组
小白菜(Brassica rapa subsp. chinensis)是我国广泛种植的重要叶菜,紫叶小白菜因叶片大量积累花青素,兼具优良的食用、保健与观赏价值,深受消费者喜爱;前人已经鉴定出多个参与白菜花青素调控的基因,但紫叶小白菜‘ZBC’紫叶性状的分子起源尚不明确,该主效基因尚未被成功克隆,且其候选区间位于着丝粒附近高重复序列区域,受限于传统碎片化参考基因组,难以开展精细定位与基因解析工作;同时芸薹属远缘渐渗是获取优良性状的重要途径,但此前缺少Brassica carinata(BBCC)向白菜(AA)发生基因渐渗的直接基因组证据,因此本研究对紫叶小白菜开展T2T完整基因组组装,以期挖掘控制紫叶性状的关键基因,解析紫叶表型形成的分子机理,为花青素富集小白菜的分子育种提供理论基础与基因资源。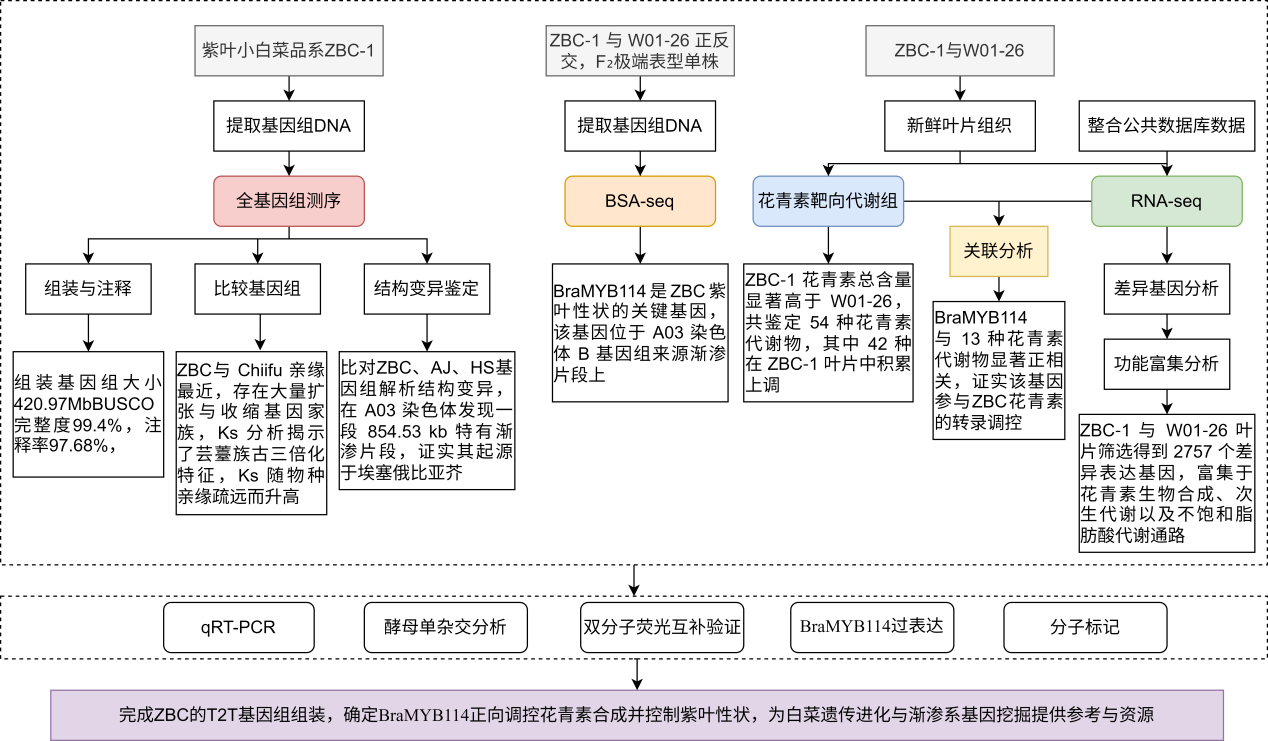
ZBC的基因组测序、组装与评估
作者开展紫叶小白菜品系‘ZBC’的基因组测序、组装与质量评估工作,通过 k‑mer 分析预估其基因组大小接近 450 Mb;借助 PacBio HiFi 完成重叠群组装,经 Illumina 数据校正后结合Hi‑C数据锚定得到10条假染色体,组装基因组总长度 420.97 Mb,contig N50 为 36.44 Mb、scaffold N50 为 44.69 Mb;研究共识别 20 个端粒并完成全部染色体着丝粒定位,同时结合同源比对与从头预测注释重复序列,发现重复序列占基因组 52.34%,LTR 反转录转座子为主要转座元件,Gypsy和Copia超家族呈现出差异化的染色体区域分布特征;综合多种证据共注释51387个蛋白编码基因以及snRNA、miRNA等多种非编码RNA,通过读段比对、BUSCO、QV、LAI 等多项指标评估,证实‘ZBC’近T2T基因组组装连续性、完整度与碱基准确度均较高,优于多数已发表白菜基因组,为后续比较基因组与性状基因解析提供了高质量参考基因组。
图1. ZBC基因组的组装结果、染色体序列特征及转座元件丰度 (A) 白菜‘ZBC’品系表型,比例尺:5 cm。 (B) 10 条染色体的 Hi‑C 互作热图,分箱大小:0.3 Mb,X 轴单位:Mb。 (C) ZBC基因组组装的圈图(Circos 图)。由外圈至内圈依次为:染色体长度(Mb)、基因密度、GC 密度、重复序列密度、染色体间共线性(窗口大小 0.5 Mb)。 (D) 染色体水平上基因密度、重复序列密度与 GC 含量的分布特征(0.5 Mb 滑动窗口)。 (E) Copia 超家族 LTR 反转录转座子的系统发育分析。 (F) Gypsy 超家族 LTR 反转录转座子的系统发育分析。利用 RAxML 软件,基于全部 Copia/Gypsy 超家族 LTR‑RT 序列,采用最大似然法构建系统发育树。 比较基因组分析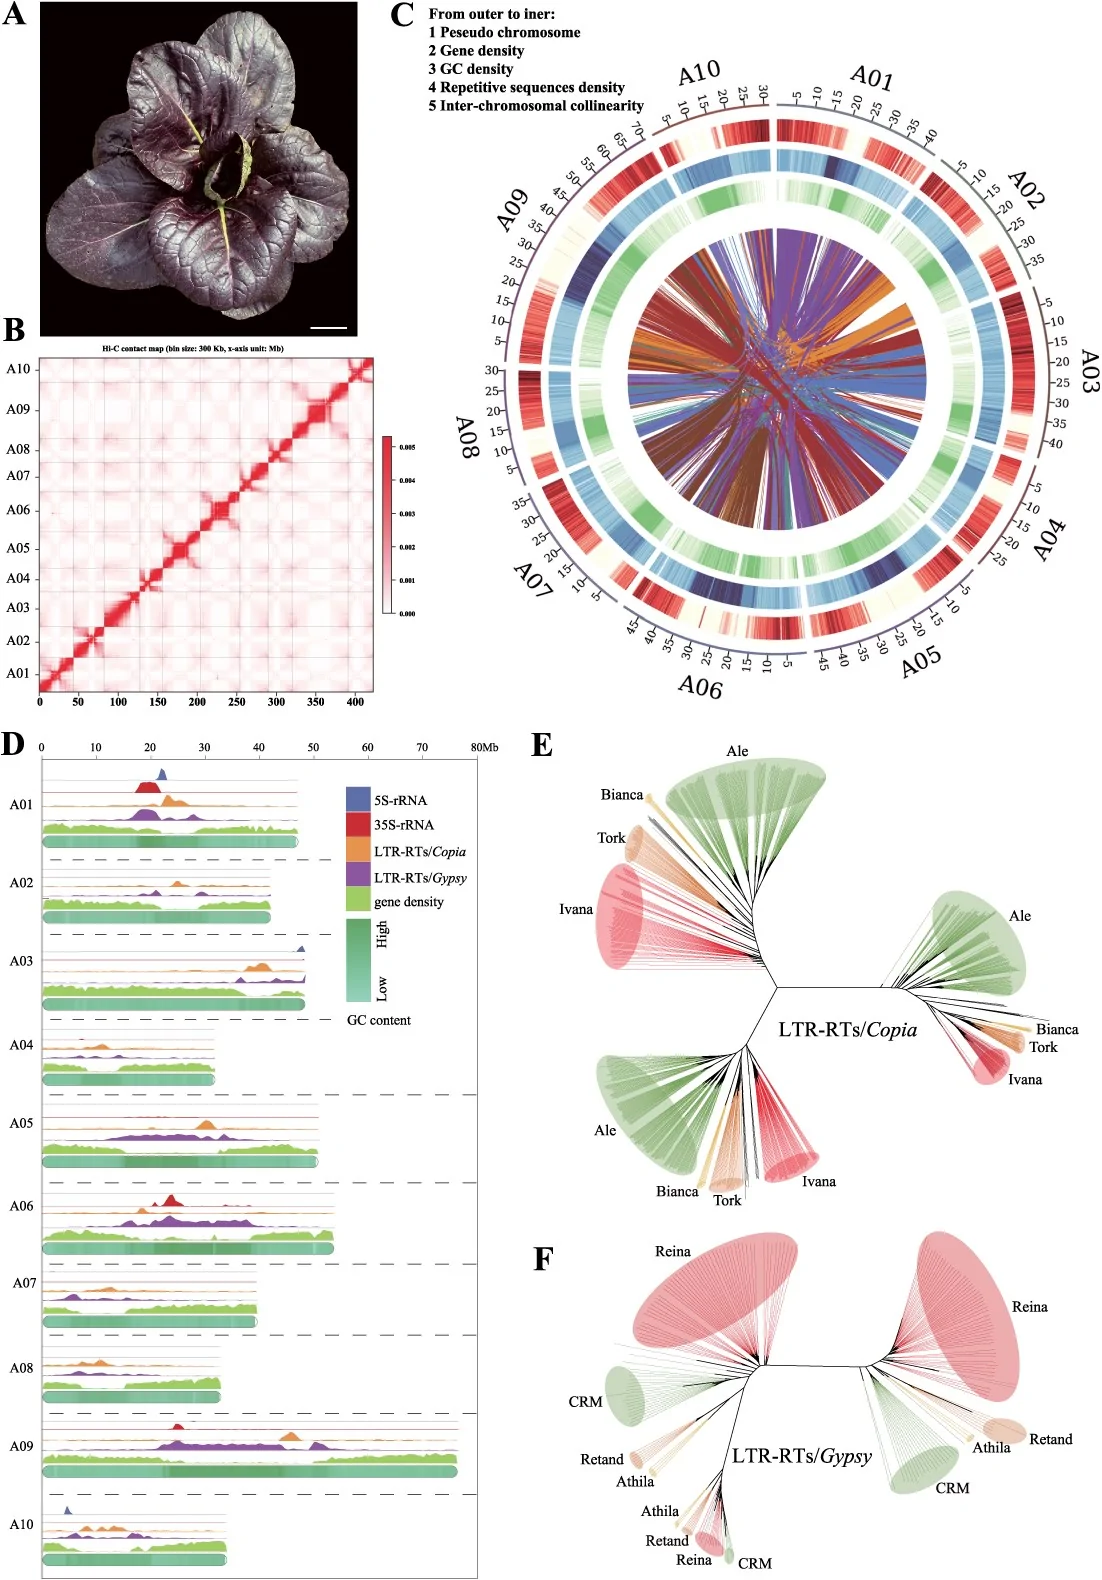
本研究利用1868个共有单拷贝直系同源基因家族开展比较基因组分析,构建系统发育树,结果显示6个白菜亚种聚为一支,约618万年前与甘蓝分化,‘ZBC’和Chiifu亲缘最近,分化时间约182万年前;基因家族进化分析发现‘ZBC’存在539个扩张、163个收缩的基因家族,扩张家族显著富集于自噬、植物激素信号转导、糖代谢及植物次生代谢物合成通路;通过基因组内与种间同源基因的Ks分布解析演化历史,‘ZBC’旁系同源基因Ks分布与十字花科其他物种相近,白菜类群同源基因Ks出现0.03与0.32两个峰值,源于芸薹族古基因组三倍化事件,同时‘ZBC’与甘蓝、黑芥、萝卜、诸葛菜的种间同源基因Ks依次增大,印证物种亲缘关系越远,同义替换率越高的演化规律。
图2. ZBC基因组的进化与比较基因组分析 (A) ZBC及另外9个类群的系统发育树与分化时间估算;中间面板展示各物种基因家族的扩张/收缩情况,右侧面板为各类基因的数量。 (B) 共线性基因对的同义替换率(Ks)分布。 (C) ZBC与其余9个类群间共线性基因的Ks值分布。 全基因组结构变异鉴定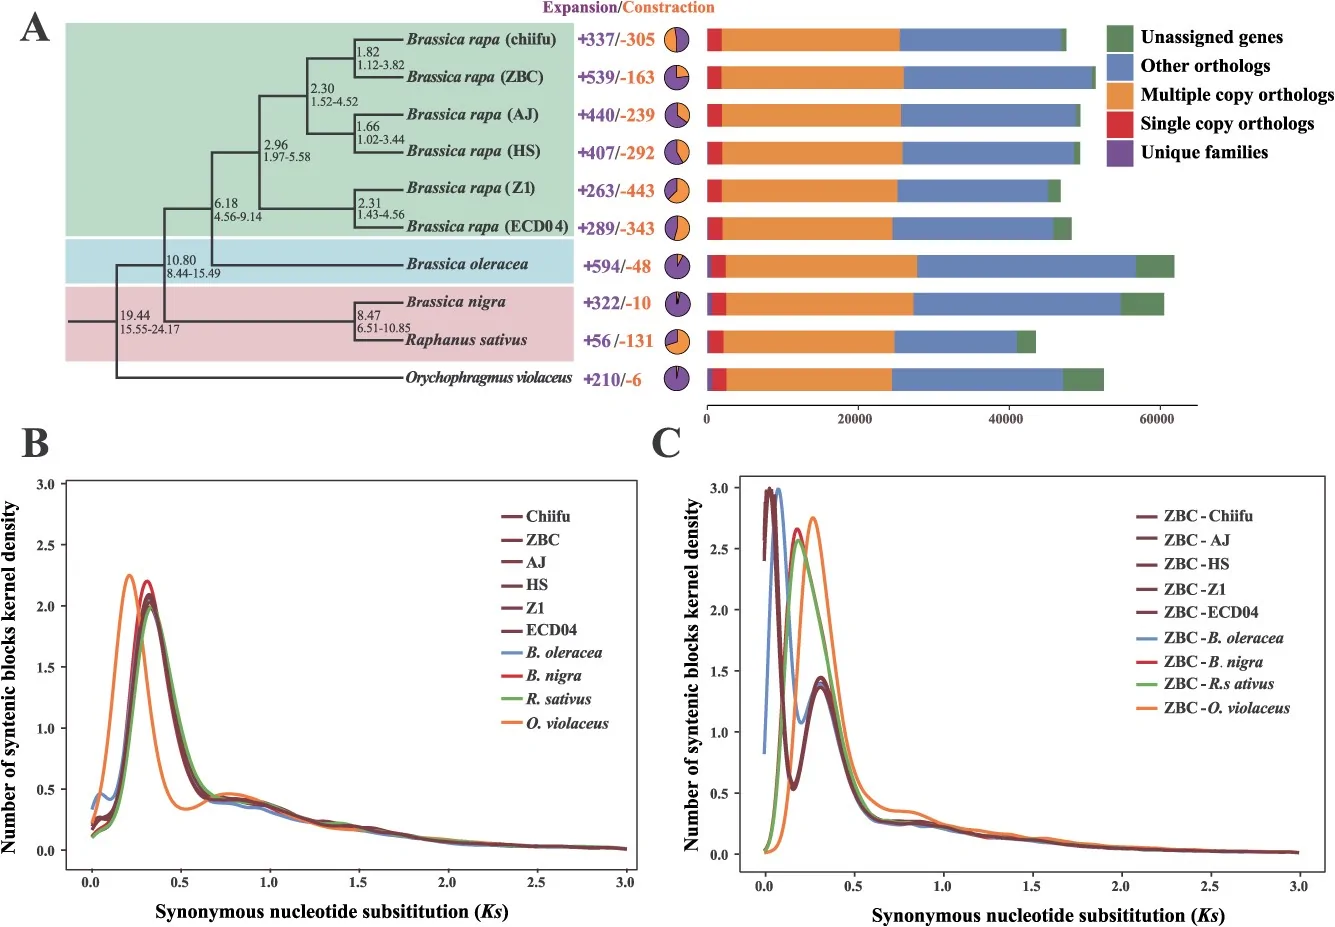
为分析ZBC与其他白菜亚种的基因组序列变异,将ZBC基因组分别与AJ(小白菜)和HS(紫芜菁)基因组比对,鉴定 SNP、InDel 及各类结构变异,发现‘ZBC’与‘AJ’、‘HS’之间存在大量倒位、易位和片段重复;在A03染色体短臂 42.98–43.84 Mb 区间鉴定到一段约854.53 kb的特有渐渗片段,该片段在‘AJ’和‘HS’中无对应共线性区块,重测序覆盖度、IGV可视化及分子标记验证均证实该片段真实存在;进化分析表明该渐渗片段的同源基因 Ks 特征与携带 B 亚基因组的芸薹属物种相近,多物种基因组比对与系统发育分析进一步证明该片段源自 B 基因组,且与埃塞俄比亚芥亲缘关系最近,推测来源于埃塞俄比亚芥。
图3. 在‘ZBC’的 A03 染色体短臂鉴定到一段 854.53 kb的渐渗片段 (A) ‘ZBC’、‘AJ’与‘HS’基因组间的共线性分析。 (B) ‘ZBC’、‘AJ’与‘HS’基因组 A03 染色体 39.00–44.60 Mb 区段的共线性分析;‘ZBC’A03 染色体 42.98–43.84 Mb 区间在‘AJ’、‘HS’基因组中均无对应的共线性片段;将 ZBC‑1 和 W01‑26 重测序数据比对到‘ZBC’基因组后,可见该 A03 对应区域读段覆盖度偏低;43.84 Mb 之后区域读段覆盖度显著升高,原因是该区域 Gypsy 型 LTR 反转录转座子分布更多。 (C) 进化分析在‘ZBC’、埃塞俄比亚芥、芥菜和黑芥的共线性区域中鉴定出 48 个同源基因,将埃塞俄比亚芥、芥菜、黑芥的同源基因分别与‘ZBC’同源基因比对并计算 Ks 值。 (D) 基于‘ZBC’(BraA03)、埃塞俄比亚芥(BcaB05)、芥菜(BjuB05)、黑芥(BniB05)共线性区域的 48 个直系同源基因开展系统发育分析:对 4 个物种的 48 个同源蛋白进行序列比对、截短、拼接合并,用于构建系统发育树。 ZBC的紫叶性状与 BraMYB114 的表达相关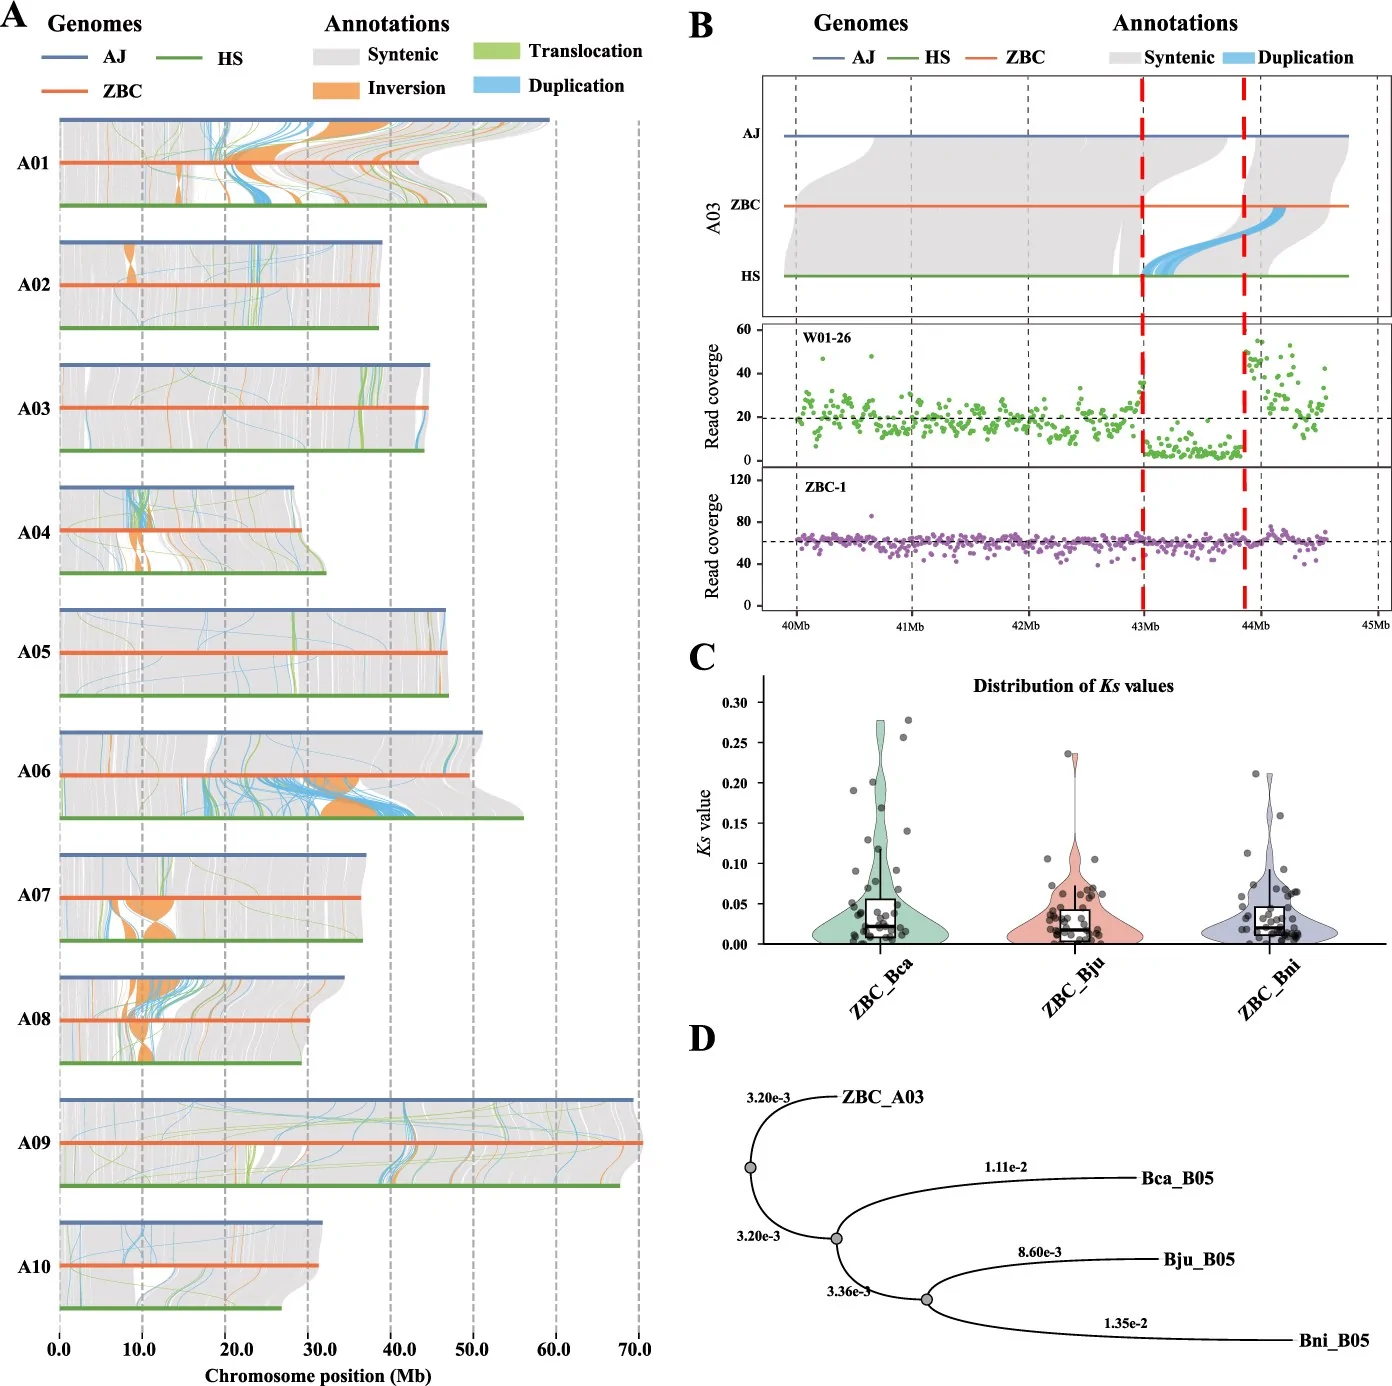
研究通过 ZBC‑1 与 W01‑26 正反交、构建 F₂和 BC₁F₁分离群体进行遗传分析,分离比例表明‘ZBC’紫叶性状由一个不完全显性核基因控制,无细胞质遗传效应;利用 F₂极端表型单株开展 BSA‑seq,将目标位点初步定位至 A03 染色体 24.72–44.28 Mb 区间,再结合 F₂绿叶单株完成精细定位,缩至 796.57 kb 候选区段,该区间与前期鉴定的 A03 染色体 854.53 kb 渐渗片段重叠,渐渗区域重组抑制导致难以进一步缩小区间;候选区间注释得到 48 个基因,筛选推测BraA03G007112(命名为BraMYB114)为紫叶性状关键基因;多芸薹属物种同源基因系统发育分析证实,携带BraMYB114*的渐渗片段来源于 B 亚基因组,与埃塞俄比亚芥亲缘最近。
图4. ‘ZBC’中BraMYB114基因的精细定位 (A–D) ZBC‑1、正反交 F₁代杂交植株(♀ZBC‑1 × W01‑26♂、♀W01‑26 × ZBC‑1♂)以及 W01‑26 的表型,比例尺:2 cm。 (E) 用于鉴定紫叶性状候选区间的 BSA‑seq 分析。 (F) 将候选区域定位至 A03 染色体 24.72–44.28 Mb。 (G) 该 19.56 Mb 候选区间包含着丝粒及其邻近的近着丝粒区;Pcen:近着丝粒区。 (H) 紫叶性状基因在 A03 染色体短臂的精细定位。共选取 1116 株极端隐性单株开展紫叶性状基因精细定位,采用图位克隆策略,最终将目标区间锁定在 ID155 与 ID159 标记之间。ID:插入缺失标记。 (I) A03 染色体短臂上一段源自埃塞俄比亚芥的 854.53 kb 渐渗片段,该渐渗片段结果来自本研究前述基因组变异分析(详见图 3);黄色条之间的染色体区域代表渐渗片段与紫叶性状基因定位区间的重叠区域。 (J) 渐渗片段与目标定位区间在 42.98–43.37 Mb 重叠,提示‘ZBC’紫叶性状基因位于该区域。 (K) 候选基因预测:MYB114 类转录因子BraA03G007112调控‘ZBC’紫叶性状。 ZBC中的花青素生物合成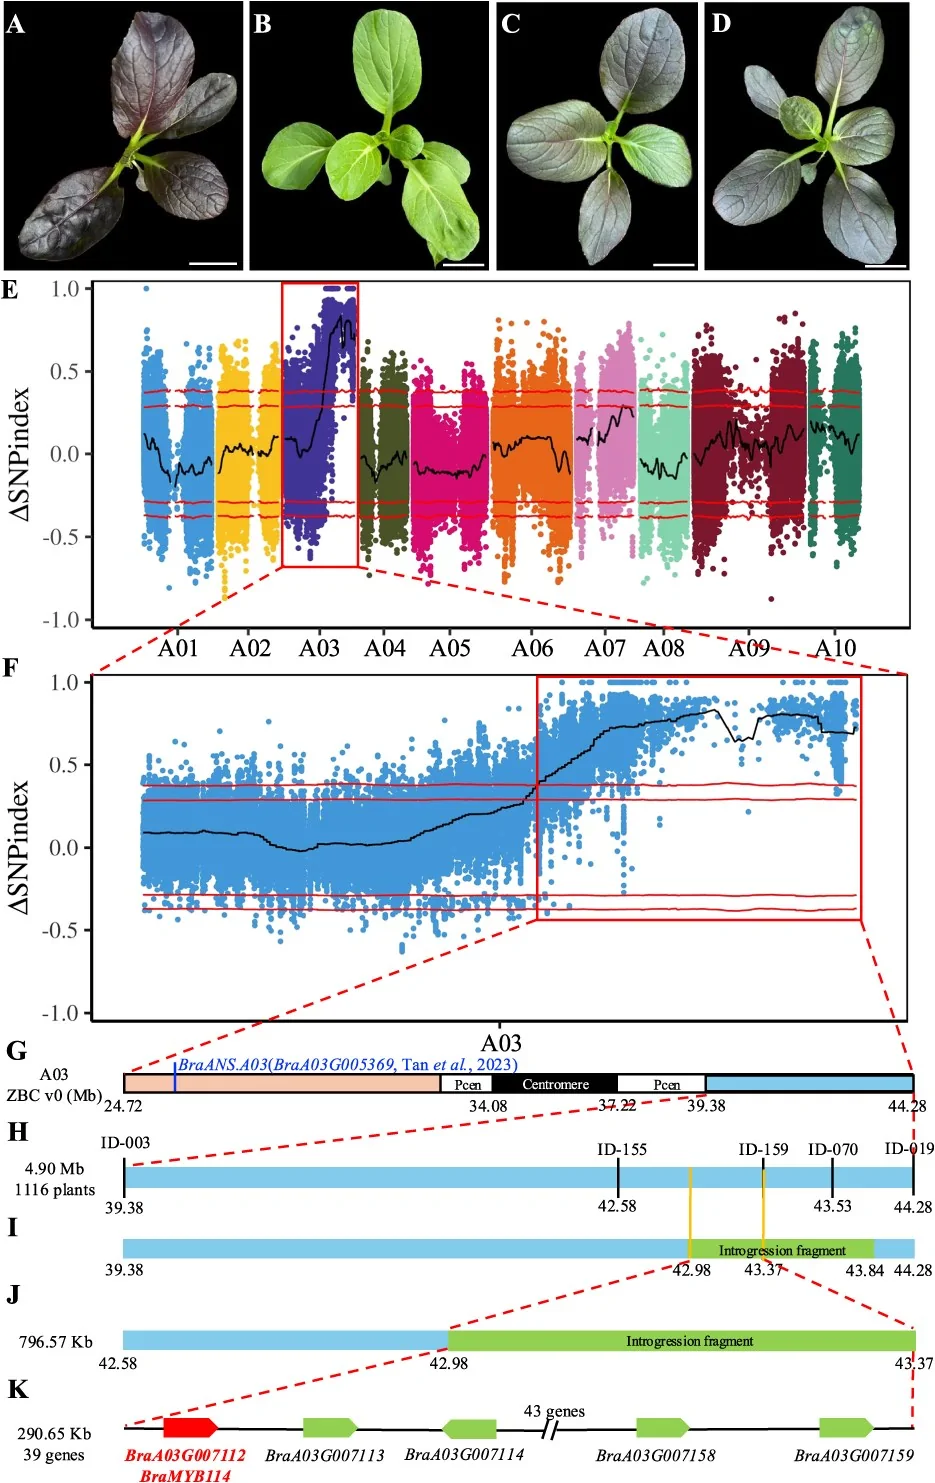
本研究测定 ZBC‑1 与 W01‑26 叶片花青素含量,并联合开展转录组与代谢组解析花青素合成调控机制,ZBC‑1 叶片花青素含量显著高于 W01‑26;代谢组共鉴定到 54 种花青素代谢物,其中 42 种在 ZBC‑1 中积累上调;转录组筛选得到 2757 个差异表达基因,GO 与 KEGG 富集显示差异基因集中于胁迫响应、次生代谢及花青素合成通路,同时富集在 α- 亚麻酸、亚油酸代谢通路,提示‘ZBC’营养价值更高;关联分析表明BraMYB114与 13 种花青素代谢物显著正相关,证实该基因参与‘ZBC’花青素的转录调控。
图5. ZBC‑1 与 W01‑26 的代谢组与转录组分析 (A) 总花青素含量。 (B) ZBC‑1 和 W01‑26 叶片差异积累代谢物(DAMs)分析。 (C、D) ZBC‑1 和 W01‑26 叶片差异表达基因(DEGs)分析。 (E) ZBC‑1 与 W01‑26 叶片中含量≥1 μg/g 干重的花青素聚类热图;所有代谢物数据经 log₂转换后绘制热图。 (F) ZBC‑1 和 W01‑26 叶片差异表达基因的 KEGG 富集分析。 (G) 差异积累代谢物与差异表达基因的调控网络;蓝色圆圈代表花青素合成基因(ABGs),橙色三角代表差异积累代谢物(DAMs),橙色连线表示正相关,灰色连线代表负相关;核心基因BraMYB114以及代谢物 Anthocyanidin_145、Anthocyanidin_148 以红色高亮标出。 BraMYB114 是调控白菜花青素生物合成的关键转录因子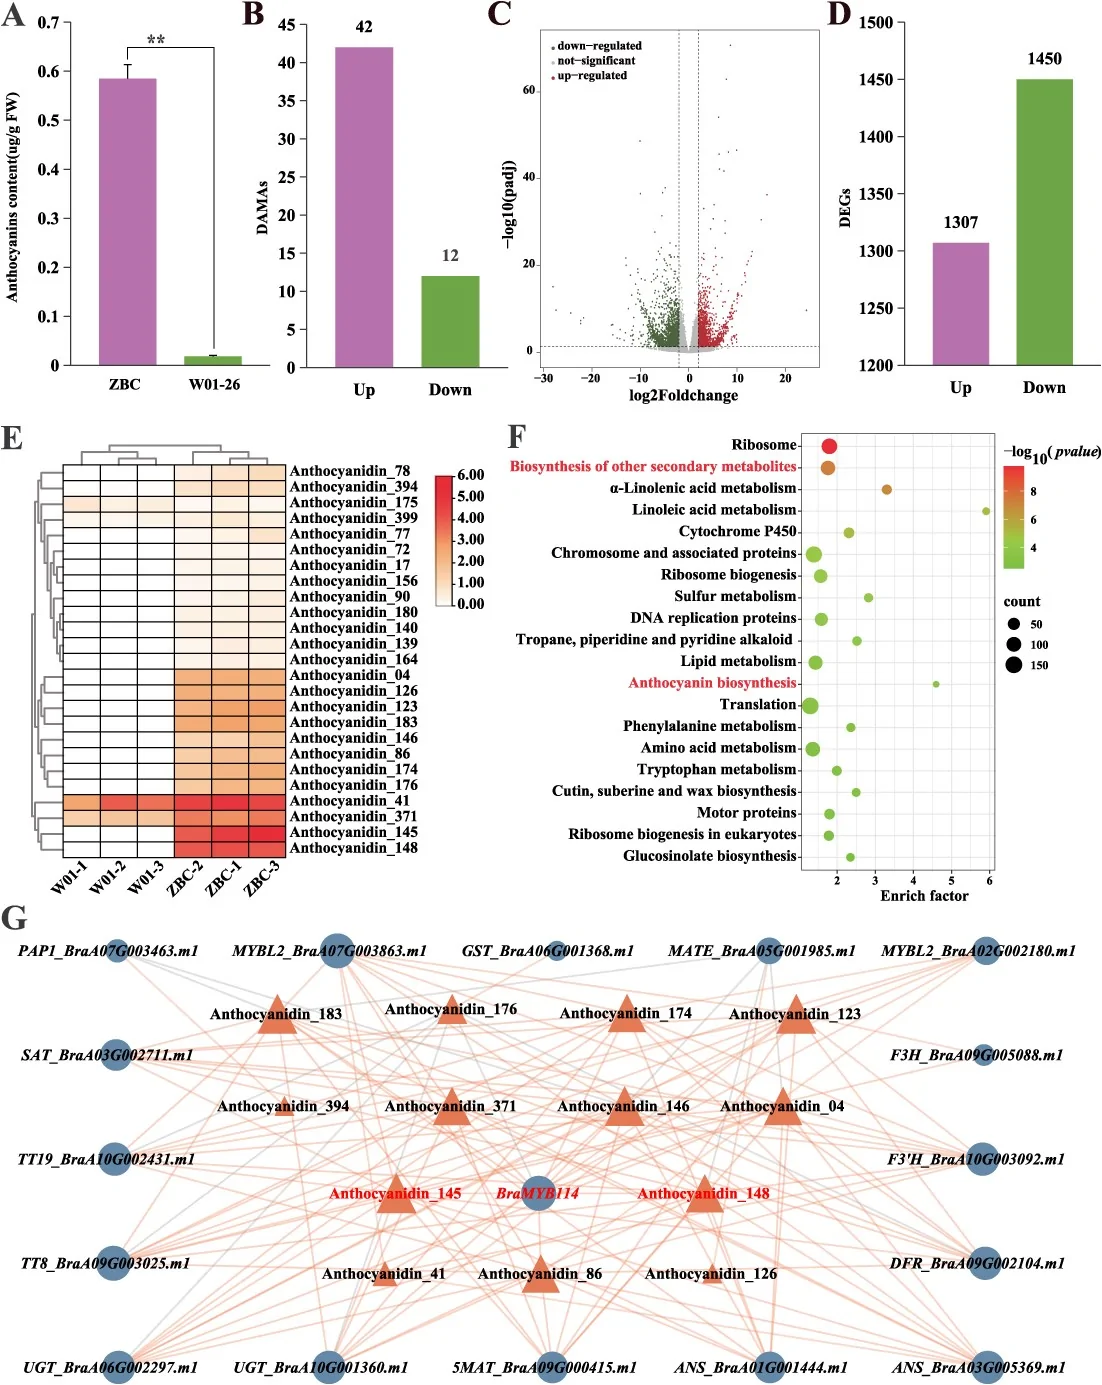
通过拟南芥过表达、BiFC 蛋白互作与酵母单杂交试验开展BraMYB114功能验证,拟南芥过表达BraMYB114后子叶与下胚轴呈现紫色,证实该基因可激活花青素积累;BiFC 证明 BraMYB114 与 BraTT8 在细胞核内发生蛋白互作;酵母单杂交验证 BraMYB114 能够直接结合花青素合成关键基因BrANS.A01和BrDFR.A09的启动子。同时开发4对BraMYB114特异性分子标记,在 F₂分离群体和19份白菜种质资源中验证,标记与紫叶性状完全连锁,提示该渐渗事件为紫小白菜特有,可为高花青素白菜分子标记辅助育种提供工具。
图6. ZBC‑1与 W01‑26中花青素合成基因(ABGs)的表达模式 (A) ZBC‑1、W01‑26 叶片中花青素合成基因的表达模式;蓝色标注基因为抑制因子,红色标注为激活因子;热图由 FPKM≥1 的基因绘制。 (B) ZBC‑1、W01‑26 叶片花青素合成基因的相对表达量;蓝色柱状图代表 qRT‑PCR 结果,红线代表转录组得到的 FPKM 值。 本研究组装得到‘ZBC’的T2T基因组,在 A03 染色体上鉴定到一段来自埃塞俄比亚芥(B. carinata)、长度为 854.53 kb 的渐渗片段;精细定位结果表明,位于该渐渗片段上的BraMYB114是调控‘ZBC’紫叶性状的关键基因。转录组、代谢组以及 qRT‑PCR 分析证明BraMYB114正向调控花青素生物合成。本研究首次证实该渐渗片段上的BraMYB114能够促进白菜花青素合成。该研究结果深化了人们对白菜基因组的认知,为渐渗系中重要性状基因的研究提供研究思路,也为白菜遗传与进化研究提供了宝贵材料资源。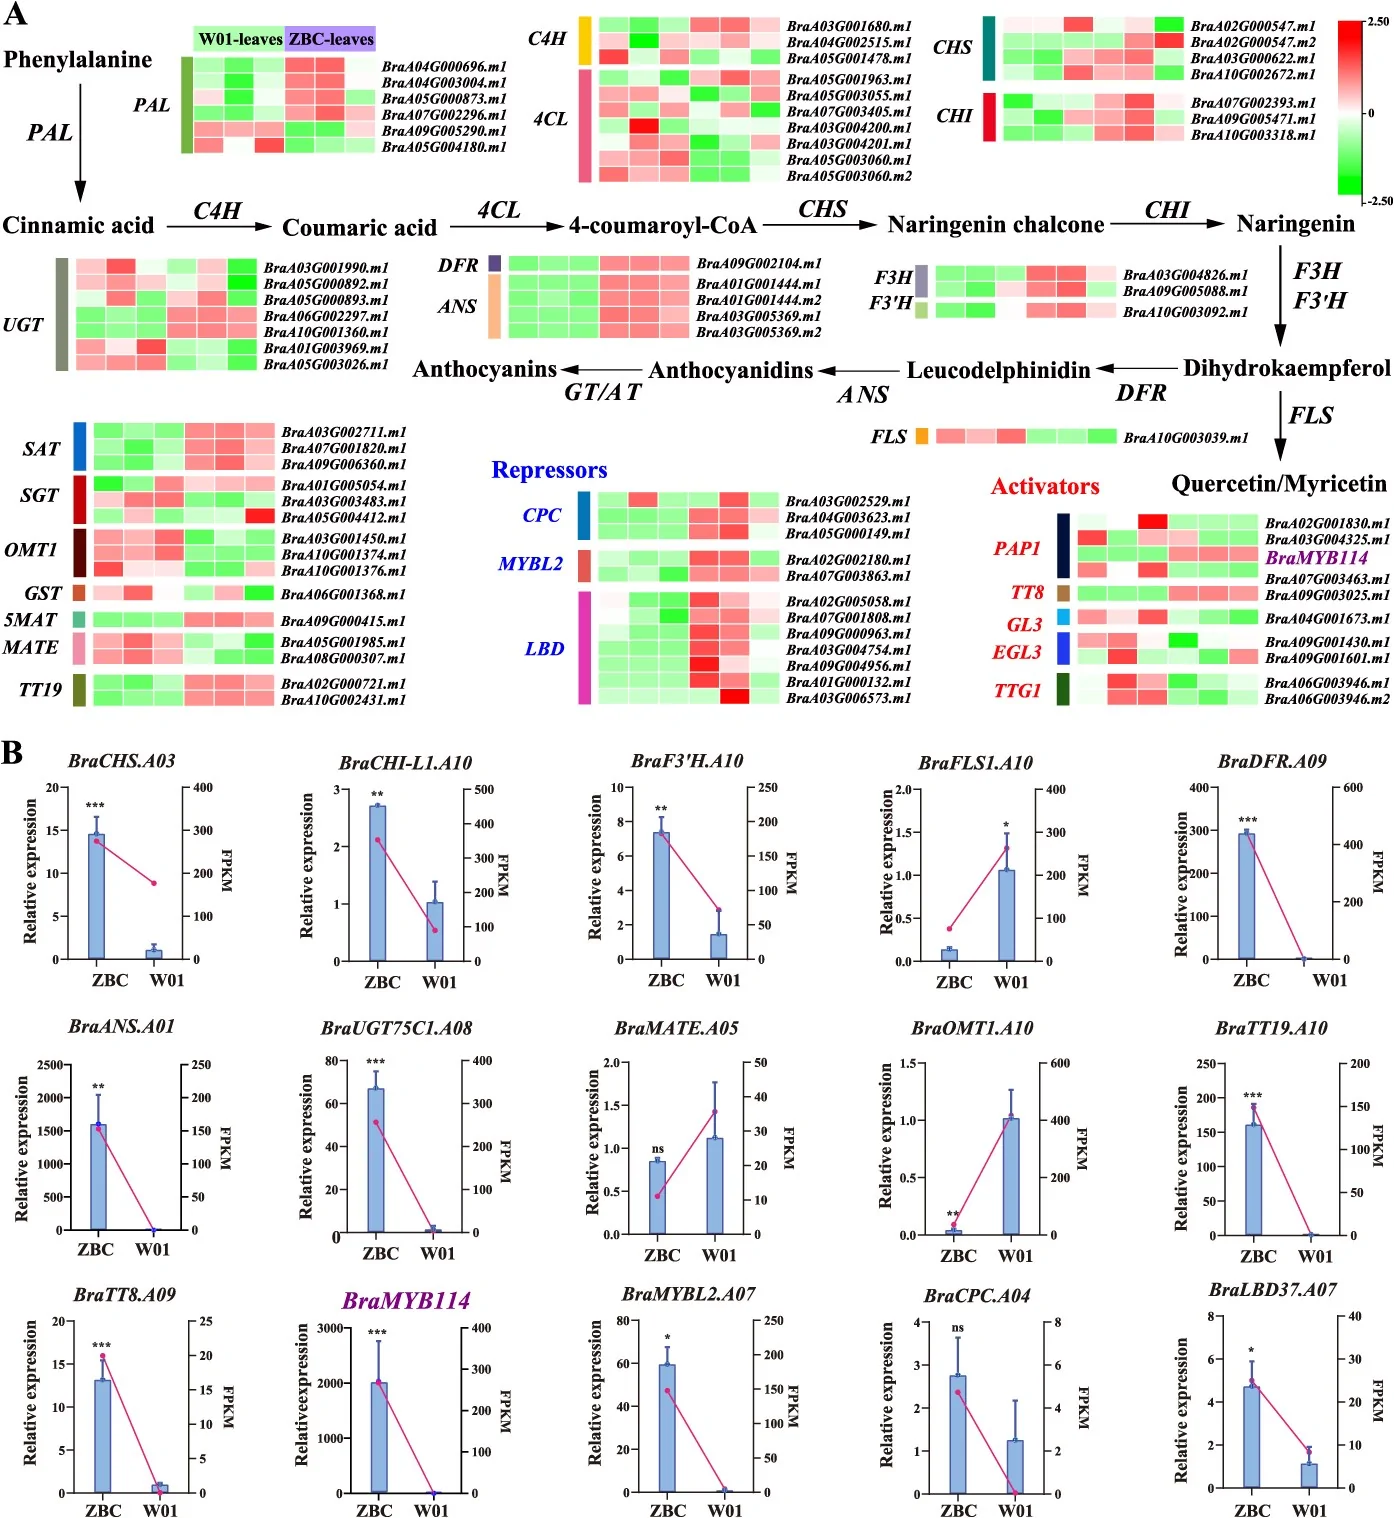
点击查看产品详情:基因组